• Biología

    Biología

    El átomo, macromoléculas biológicas (carbohidratos, lípidos, proteínas, ácidos nucleicos), biología celular, cáncer

  • Fármacos

    Fármacos

    Fases en el desarrollo de fármacos, farmacodinámica, farmacocinética, toxicología

  • Nanomedicina

    Nanomedicina

    Introducción a la nanotecnología, herramientas de diagnóstico, liberación de fármacos, medicina regenerativa

  • Miscelánea

    Miscelánea

    Ampliación de temas diversos tratados en otras secciones

Entradas correspondientes a la categoría: Biologia

Entradas correspondientes a la etiqueta: Biologia

4.5.2. Reproducción celular II

0 comentarios
El ciclo celular es un conjunto de sucesos ordenados que involucran el crecimiento y la división celular para producir dos células hijas nuevas.

Las células en su camino hacia la división celular atraviesan una serie de etapas de crecimiento, replicación del DNA y división, cuidadosamente reguladas y sincronizadas con precisión con el fin de producir dos células idénticas.

Dos fases principales componen el ciclo celular: la interfase y la fase mitótica. Durante la primera, la célula crece y se replica el DNA. Mientras, en la fase mitótica, el DNA replicado y el contenido citoplasmático se separan y la célula se divide.


Interfase

La interfase es el período más largo del ciclo celular, transcurre entre dos mitosis y en ella se distinguen las siguientes fases:
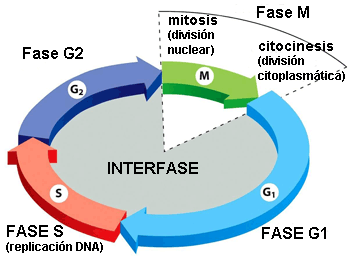
Etapas de la interfase
▣      G1: la célula crece hasta alcanzar su tamaño crítico. Se sintetizan RNA y proteínas y se duplica el centrosoma. Si las condiciones son adecuadas, la célula sobrepasa el denominado punto de restricción (punto de control de la fase G1) y continúa a la siguiente fase.
Las células diferenciadas que no se dividen (p. ej., neuronas o células del músculo cardíaco) abandonan el ciclo celular en esta etapa y comienzan la fase G0[1].
▣      S: se replica el DNA. De este modo, las dos células hijas heredarán el mismo genoma de la célula madre.
▣      G2: fase de reparación del DNA y preparación para la mitosis. La célula duplica su tamaño respecto a G1.


Fase mitótica

La fase mitótica es un proceso de múltiples pasos durante el cual los cromosomas duplicados se alinean, se separan y se trasladan a las dos nuevas células hijas generadas.
La primera parte de la fase mitótica se denomina cariocinesis, mitosis o división del núcleo y la segunda parte citocinesis, que consiste en la separación física de los componentes citoplasmáticos en las dos células hijas.
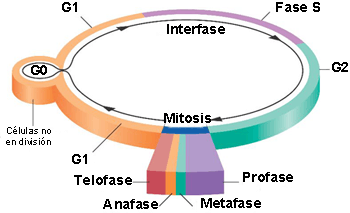
En la mitosis se produce el reparto equitativo del material genético, que consta, a su vez, de las siguientes etapas:
Ciclo celular de las células somáticas
▣      Profase: la cromatina se condensa, se forma el huso mitótico[2] y el nucleolo desaparece.
▣      Prometafase: se origina la desintegración de la envoltura nuclear. Los cromosomas se unen a los microtúbulos gracias a los cinetocoros[3].
▣      Metafase: los cromosomas se alinean aleatoriamente en un plano denominado placa metafásica, o plano ecuatorial, a mitad de camino entre los dos polos de la célula.
▣      Anafase: se produce el acortamiento de los microtúbulos del huso que da lugar a la separación de las cromátidas hermanas.
▣      Telofase: los cromosomas se descondensan y se organiza la envoltura nuclear. Se forma el nucleolo y desaparece el huso mitótico.

En la etapa final de la fase mitótica, la citocinesis, se forma un anillo contráctil de filamentos de actina que divide el citoplasma entre las dos células hijas.
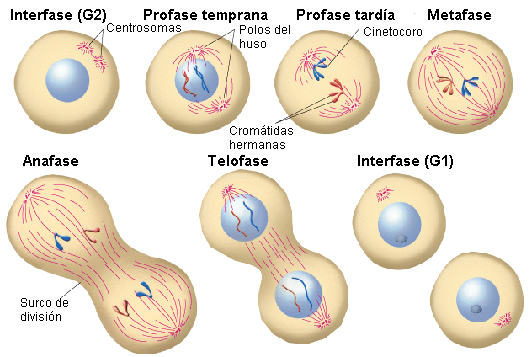
Etapas de la fase mitótica


Control del ciclo celular

La duración del ciclo celular es altamente variable, incluso en las células de un mismo organismo. En los humanos varía desde unas pocas horas de las células embrionarias a una media de 2 a 5 días para las células epiteliales o el período de una vida humana completa para las células especializadas, como las células musculares cardíacas o las neuronas corticales.

También existe variación en el tiempo en el que una célula transcurre en cada fase del ciclo. Así, por ejemplo, las células humanas con un ciclo de 24 horas, pasan aproximadamente nueve horas en la fase G1, diez horas en la fase S, alrededor de cuatro horas y media en la fase G2 y aproximadamente treinta minutos en la fase M.

La regulación del tiempo en cada uno de los pasos del ciclo celular es controlada por mecanismos tanto internos como externos a la célula.

Regulación a través de eventos externos
Tanto el comienzo como la finalización del ciclo celular son activados por eventos externos a la célula cuando está a punto de comenzar el proceso de replicación.
Por ejemplo, sucesos como la muerte de una célula cercana, la liberación de hormonas promotoras del crecimiento o que la célula alcance un determinado tamaño pueden iniciar la división celular.
Independientemente del tipo de mensaje recibido, la célula recibe la señal y una serie de acontecimientos en su interior la dirigen hacia la interfase.
Partiendo de este punto inicial, debe satisfacerse cada parámetro requerido en cada fase para que el ciclo celular pueda seguir adelante.

Regulación a través de puntos de control internos
Los puntos de control del ciclo celular van a evitar que las células con errores en la duplicación o en la distribución de los cromosomas y que, por lo tanto, produzcan mutaciones, puedan continuar progresando hasta que sean solventados.

Se distinguen tres puntos de control:
▣      Punto de control G1: también denominado punto de restricción en mamíferos. Actúa cerca del final de la fase G1 y determina si se dan todos los requisitos necesarios para proceder a la división celular.
Puntos de control internosSi no se cumplen, la célula puede parar el ciclo hasta que las condiciones adversas se solucionen o puede pasar a la fase G0 y esperar señales que indiquen que las condiciones han mejorado.
▣      Punto de control G2: realiza su acción durante la transición de las etapas G2/M. Su misión más importante es asegurar que todos los cromosomas han sido replicados y esa replicación se ha producido sin daños en el DNA. Si se detectasen daños, el ciclo se para, y la célula intenta completar la replicación del DNA o repara el que está dañado.
▣      Punto de control M: también conocido como punto de control del ensamblaje del huso. Tiene lugar cerca del final de la etapa de la cariocinesis.
Determina si las cromátidas hermanas están correcta y firmemente unidas a los microtúbulos mediante los cinetocoros.

El sistema de control del ciclo celular podría asemejarse al sistema programador de una lavadora, donde la lavadora solamente prosigue con el lavado si las señales que recibe de sus sensores (puerta cerrada, niveles de agua y detergente, suministro eléctrico) son las adecuadas para continuar durante las distintas etapas del ciclo de lavado.


Moléculas reguladoras del ciclo

Además de los puntos de control, existen unas moléculas intracelulares que regulan el ciclo celular y que pueden actuar de manera individual o influyen en la actividad o en la producción de otras proteínas reguladoras.
Se distinguen dos grupos:
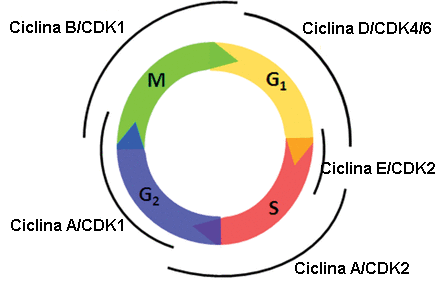
Moléculas reguladoras del ciclo celular (ciclinas y CDKs)
▣      Aquellas moléculas que promueven el progreso de la célula a la siguiente fase (regulación positiva). A su vez, se clasifican en dos tipos de proteínas: ciclinas[4] y quinasas dependientes de ciclinas (CDKs)[5].
▣      El segundo grupo de moléculas reguladoras son los reguladores negativos que se encargan de parar el ciclo celular. Las mejores conocidas de todas ellas son las proteínas del retinoblastoma (Rb), p53 y p21.
La proteína del retinoblastoma es una proteína supresora de tumores que se encuentra alterada en muchos tipos de cáncer (próstata, mama), pero es del cáncer de retina de donde toma su nombre.
La proteína p21 inhibe el ciclo celular, estando sus niveles controlados, a su vez, por la proteína p53 que regula el crecimiento celular y controla los daños en el DNA, parando el ciclo en su caso, pudiendo inducir apoptosis.


[1] Fase de quiescencia (inactividad) permanente o temporal en la que se detiene el ciclo celular.
[2] Conjunto de microtúbulos cuya función es posibilitar la migración y correcta separación de los cromosomas durante la mitosis.
[3] Estructuras proteicas cuya función es iniciar, controlar y supervisar los movimientos de los cromosomas durante la división celular.
[4] Proteínas sintetizadas en la interfase y destruidas al final de la mitosis en cada ciclo. Regulan la actividad enzimática de las CDKs.
[5] Enzimas que activan o inactivan otras proteínas fosforilándolas (añadiéndoles grupos fosfatos).

Fuentes: OpenStax College, Biology. OpenStax College. 30 May 2013.
              http://www.biocancer.com/journal/1219/41-regulacion-positiva-del-ciclo-celular
              http://www.pucmmsti.edu.do/websise/estudiante/materias/201120122/ST-BIO-112-T-003/04.%20Regulacion%20del%20ciclo%
              20celular%20Apoptosis%20Cancer%20%20.pdf
              http://bio3400.nicerweb.com/Locked/media/ch02/interphase.html
              http://www.slideshare.net/obessionforu/cell-cycle-and-molecular-basis-of-cancer
              http://biologicalexceptions.blogspot.com.es/2013_01_01_archive.html
              http://gleesonbiology.pbworks.com/w/page/7537859/C9
              http://www.bioscirep.org/content/30/4/243


Leer más
4.5.1. Reproducción celular I

0 comentarios
El ser humano, como cualquier otro organismo que se reproduce sexualmente, comienza la vida a partir de un cigoto u óvulo fertilizado.
Posteriormente, ocurren miles de millones de divisiones celulares de una manera controlada para dar lugar a un ser humano multicelular complejo, o lo que es lo mismo, una única célula es el ancestro común del resto de células del organismo.
Aún cuando un ser vivo se ha desarrollado por completo, la división celular sigue siendo necesaria para el crecimiento, mantenimiento y reparación de sus células y tejidos. Esta división se encuentra estrictamente regulada para evitar consecuencias que pudieran ser fatales para la vida de ese organismo.


División celular

La reproducción celular por medio del ciclo celular constituye el fundamento que permite la continuidad de la vida de una célula a otra. Este ciclo, que se halla fuertemente regulado, describe las etapas de la vida de una célula desde la división de una sola célula madre hasta la producción de dos células hijas nuevas.

Antes de continuar con el proceso de reproducción celular, es necesario conocer ciertos conceptos acerca de la estructura y función de la información genética de una célula.Estructura del cromosoma
El número de cromosomas[1] de las células eucariotas varía dependiendo de la especie. En el caso del ser humano, sus células corporales (células somáticas) tienen 46 cromosomas, mientras que las células sexuales o gametos (óvulos y espermatozoides) tienen 23 cada uno.
Las células somáticas contienen dos series de cromosomas (2n[2]) en una configuración conocida como diploide.
Los gametos que poseen un único conjunto de cromosomas se designan 1n y se conocen como células haploides.

Los genes (unidades funcionales de los cromosomas) determinan unas características concretas al codificar ciertas proteínas específicas, siendo los rasgos las variaciones de dichas características. Por ejemplo, el color de los ojos es una característica con unos rasgos que pueden ser marrones, azules o verdes.
Estos rasgos en un individuo van a estar establecidos por los genes heredados de cada padre.

Si se desplegase el DNA de los 46 cromosomas de una célula humana de extremo a extremo, mediría en torno a los dos metros con un diámetro de 2 nm. Considerando que una célula típica tiene un tamaño de 10 μm, el DNA debe compactarse fuertemente para caber en el núcleo celular y debe ser rápidamente accesible para que los genes sean expresados.

Durante varias fases del ciclo celular, las largas cadenas de DNA se hallan altamente condensadas en cromosomas. Existen diversos mecanismos por los que los cromosomas son compactados, interviniendo en todos ellos varias clases de proteínas que ayudan a la organización y empaquetamiento del DNA cromosómico.

En el primer nivel de compactación del DNA, éste se encuentra fuertemente empaquetado en torno a un núcleo de ocho proteínas estructurales (histonas) a intervalos regulares a lo largo del cromosoma, formando la denominada cromatina.
La unidad fundamental de organización de la cromatina en las células eucariotas es el nucleosoma, formado por un fragmento de DNA de unos 200 pb (pares de bases) y un octámero (grupo de ocho) de histonas. Esta estructura compacta siete veces la molécula de DNA y su aspecto al microscopio electrónico es el de un ‘collar de cuentas’ con un espesor de 10 nm.
Niveles de compactación del DNA

En el segundo nivel de compactación, fibras de nucleosomas de 10 nm y el DNA espaciador[3] se enrollan en fibras de 30 nm (compactación de 50 veces respecto a la molécula de DNA).

En el tercer nivel, se emplean proteínas fibrosas para compactar la cromatina dando lugar a bucles de 250-400 nm de longitud. Estas proteínas aseguran que cada cromosoma en la fase de no división celular ocupe una zona determinada del núcleo sin que se solapen con los otros.

Los niveles superiores de organización se encuentran en las cromátidas (700 nm - 1 μm de espesor), que al unirse dos de ellas, a través de una región denominada centrómero, forman los cromosomas metafásicos[4].


[1] Estructuras altamente organizadas formadas por DNA y proteínas, que contienen la mayor parte de la información genética de un individuo.
[2] n indica el número de series de cromosomas..
[3] Regiones de DNA que no se transcriben y se localizan entre genes que sí lo hacen.
[4] Metafase: segunda fase de la mitosis (división celular) en la que desaparece la membrana nuclear y los cromosomas se sitúan en el plano ecuatorial de la célula.

Fuentes: OpenStax College, Biology. OpenStax College. 30 May 2013.
              https://www.quora.com/What-are-the-differences-between-chromosomes-chromatids-and-chromatin
              https://burningscience.wordpress.com/biology/dna-structure-and-replication/
              http://27.109.7.67:1111/econtent/cell-communication/principles-part-3.php
              https://www.quora.com/What-are-the-differences-between-chromosomes-chromatids-and-chromatin


Leer más

4.4. Comunicación celular

0 comentarios
Del mismo modo que la organización social depende de la comunicación entre los individuos que constituyen esa sociedad y sin ella, la sociedad se desmoronaría, las células han de ser capaces de interactuar con su ambiente.

Con el fin de responder a los estímulos externos, las células han desarrollado complejos mecanismos de comunicación con los que pueden recibir mensajes, transferir la información a través de la membrana plasmática y producir posteriormente cambios dentro de la célula en respuesta a esos mensajes.

En los organismos multicelulares, las células envían y reciben constantemente mensajes para coordinar las acciones de células, tejidos y órganos distantes. La habilidad de mandar mensajes eficaz y rápidamente permite a las células coordinar y ajustar sus funciones.
Esta capacidad que desarrollaron las células individuales para comunicarse mediante señales químicas fue un hecho fundamental para la evolución de los organismos multicelulares.


Moléculas señalizadoras y receptores celulares

Las células se van a relacionar tanto por señalización intercelular (comunicación entre células) como por señalización intracelular (comunicación dentro de la célula).
Las células señalizadoras se encargan de secretar ligandos[1] o se unen a las células objetivo o diana, iniciando una cadena de eventos en ellas.

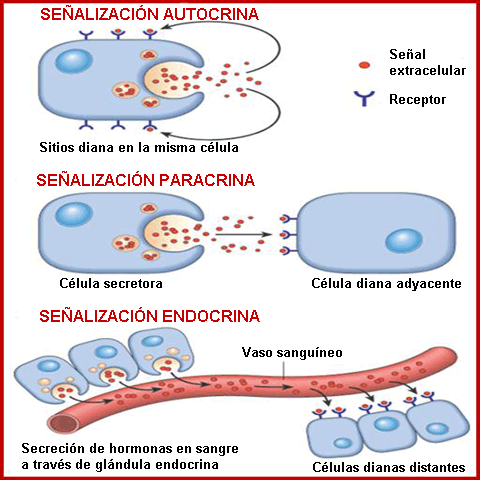
Las cuatro categorías en las que se divide la señalización en los organismos multicelulares son: señalización endocrina, autocrina, paracrina y directa mediante uniones de hendidura (señales yuxtacrinas).
La señalización endocrina se lleva a cabo a grandes distancias a través del flujo sanguíneo gracias a la acción de hormonas.
En la señalización autocrina, las señales son recibidas por la misma célula que envía la señal u otras células cercanas del mismo tipo.
La señalización paracrina también ocurre a distancias cortas bajo la acción de ligandos que viajan por el medio líquido del espacio intercelular.
Por último, las uniones de hendidura permiten a las moléculas señalizadoras circular entre células vecinas.
Tipos de señalización celular

Tipos de receptores

Los receptores son proteínas ubicadas dentro de la célula diana o en su superficie que se unen al ligando, dividiéndose en dos tipos: receptores internos y receptores superficiales.

Los primeros se localizan en el citoplasma de la célula adhiriéndose a la molécula ligando que atraviesa la membrana celular. Estos complejos receptor-ligando se desplazan hasta el núcleo e interactúan directamente con el DNA celular.

Los receptores superficiales transmiten una señal desde el exterior de la célula al citoplasma. Constan de tres partes principales: una región ubicada fuera de la célula para la unión del ligando (denominada dominio extracelular), una zona central hidrofóbica localizada en la membrana y en tercer lugar el dominio intracelular situado dentro de la célula.
Este tipo de receptores se dividen en tres categorías:
▣      Los receptores ligados a canales iónicos[2]. Cuando se asocian a sus ligandos forman un poro que atraviesa la membrana plasmática y por el cual pueden pasar ciertos iones.
▣      Receptores acoplados a proteínas G. Interactúan con las proteínas G[3] en la cara citoplasmática de la membrana celular.
Una vez que la proteína G se une al receptor, el compuesto resultante activa la proteína G, la cual libera GDP[4] y recoge GTP[5], interaccionando con otras enzimas o canales iónicos para transmitir una señal.
▣      Receptores acoplados a enzimas. Transmiten la señal de las enzimas membranales desde el exterior de la célula al dominio intracelular (extremo del receptor dentro de la célula). La unión con el ligando causa la activación de esa enzima.
Tipos de receptores celulares
Los pequeños ligandos hidrofóbicos (p.ej., esteroides) son capaces de penetrar la membrana celular y adherirse a los receptores internos.
Los ligandos hidrofílicos (solubles en agua), por el contrario, son incapaces de atravesar la membrana, por lo que se asocian con los receptores superficiales los cuales se encargan de transmitir la señal al interior de la célula.


Propagación de la señal

La unión del ligando al receptor permite la transducción[6] de la señal a través de la célula.
A la cadena de eventos encargada de transmitir la señal se le denomina 'ruta o cascada de señalización', las cuales, a menudo son muy complejas como consecuencia de la interacción entre diferentes proteínas.
Uno de los componentes más importantes en estos procesos es la fosforilación de las moléculas por medio de unas enzimas conocidas como quinasas[7].
Proceso de fosforilación de proteínasLa fosforilación añade un grupo fosfato a los residuos (cadenas R) de los aminoácidos serina, treonina y tirosina, activando o inactivando la proteína de la que forman parte o alterando su forma. También, pequeñas moléculas como los nucleótidos pueden ser fosforiladas.

Una vez se ha producido la activación de un receptor, se propaga una señal dentro de la célula a lo largo del citoplasma al alterar el comportamiento de ciertas proteínas celulares. Estas señales son liberadas por los denominados segundos mensajeros que son pequeñas moléculas no proteicas, entre las que destacan el AMP cíclico (cAMP), los iones calcio (Ca2+), el inositol trifosfato (IP3) y el diacilglicerol (DAG).


Respuesta a la señal

El inicio de las rutas o vías de señalización se produce como respuesta a estímulos externos. Los resultados a estas respuestas son muy variados y pueden adoptar muy diversas formas dependiendo del tipo de célula involucrada, así como de las condiciones internas y externas.
Entre estos efectos encontramos el crecimiento celular, la síntesis de proteínas, cambios en el metabolismo de la célula e incluso la muerte celular.

Pero las rutas de señalización van a ejercer su mayor efecto sobre la célula al iniciar la expresión génica[8] y todo ello se realiza gracias a una diversa variedad de métodos.
Así, algunas vías activan enzimas que interactúan con factores de transcripción del RNA y otras regulan la traducción de proteínas a partir del mRNA.
Otras vías, en cambio, actúan sobre el metabolismo celular, p. ej., van a permitir que las células musculares puedan transmitir sus señales de requerimiento de energía (en forma de glucosa) para desempeñar sus funciones.

Las rutas de señalización también juegan un papel muy importante en el crecimiento celular, el cual es casi siempre estimulado por señales externas, llamadas 'factores de crecimiento' (tipos de ligando que se unen con los receptores celulares superficiales).
Un crecimiento celular descontrolado conduce al cáncer, cuyo origen, a menudo, radica en las mutaciones que presentan los genes encargados de codificar las proteínas que forman parte de las vías de señalización.

Cuando una célula resulta dañada, no es necesaria o es potencialmente peligrosa para el organismo debe iniciar el mecanismo que desencadena la muerte celular programada o apoptosis. La apoptosis permite a la célula morir de un modo controlado, evitando la liberación de moléculas potencialmente dañinas, al contrario de lo que sucede en la muerte descontrolada o necrosis.
Procesos de necrosis y apoptosis
La señalización celular se va a encargar de asegurar el proceso de la apoptosis con el fin de que se produzca el desmantelamiento de la célula de una manera organizada, así como el reciclaje eficiente de los componentes de la célula muerta.

La finalización de la cascada de señalización es muy importante para que la respuesta a la señal sea la apropiada tanto en tiempo como en intensidad.
Dos de las formas más comunes de terminar la señalización dentro de las células se produce gracias a la degradación de las moléculas señalizadoras y la desfosforilación de productos intermedios de la ruta (previamente fosforilados) a través de la acción de la enzima fosfatasa[9].

Algunas de las señales anormales que se originan en las células tumorales son una buena prueba de que la finalización de una señal en el momento oportuno es tan importante como el inicio de la misma.


[1] Pequeñas moléculas volátiles o solubles que se unen a otras moléculas específicas (receptores) liberando una señal en el proceso.
[2] Receptores superficiales en los canales de las membranas plasmáticas que se abren cuando un ligando se adhiere a su dominio extracelular (extremo del receptor fuera de la célula).
[3] Son transductores de señal que llevan información desde el receptor hasta las proteínas efectoras.
[4] El guanosín difosfato es un nucleótido difosfato. Producto de la defosforilación del GTP.
[5] El guanosín trifosfato es un nucleótido de guanina que contiene tres grupos fosfatos usado en el metabolismo celular. 
[6] Transmisión de la señal desde el exterior de la célula a su interior.
[7] Enzimas que catalizan la transferencia de un grupo fosfato del ATP a otra molécula.
[8] Proceso por el que las células transforman la información codificada por los ácidos nucleicos en las proteínas necesarias para su desarrollo y funcionamiento.
[9] Enzima encargada de eliminar el grupo fosfato de una molécula que ha sido anteriormente fosforilada.

Fuentes: OpenStax College, Biology. OpenStax College. 30 May 2013.
              http://mol-biol4masters.masters.grkraj.org/html/Cellular_Signal_Transduction1-Cells_And_Signals.htm 
              http://27.109.7.67:1111/econtent/cell-communication/principles-part-3.php
              http://www.scq.ubc.ca/protein-phosphorylation-a-global-regulator-of-cellular-activity/
              http://medicinembbs.blogspot.com.es/2011/03/programmed-cell-death-apoptosis.html


Leer más

4.3.2. Respiración celular II: Fosforilación oxidativa

0 comentarios
La mayoría del ATP generado durante el catabolismo aeróbico de la glucosa no procede de las dos rutas anteriores (glucólisis y ciclo de Krebs), sino más bien del movimiento de electrones a través de una serie de transportadores de electrones que se someten a reacciones redox, lo cual causa una acumulación de iones hidrógeno dentro de la matriz mitocondrial.

Como consecuencia, se forma un gradiente de concentración en el que iones de hidrógeno se difunden fuera del espacio de la matriz al ser capaces de atravesarla con la ayuda del complejo ATP sintasa[1]. La corriente de iones de hidrógeno potencia la acción catalítica de la ATP sintasa, la cual fosforila ADP, produciendo ATP.


Cadena de transporte de electrones

La cadena de transporte de electrones es el último componente de la respiración aeróbica y la única etapa del metabolismo de la glucosa que emplea oxígeno atmosférico.
Este oxígeno se usa como el aceptor final de los electrones que han sido suprimidos de los compuestos intermedios en el catabolismo de la glucosa.

La cadena de transporte de electrones se componen de cuatro grandes complejos multiproteicos (denominados complejos I-IV) insertados en la membrana interior mitocondrial y dos pequeños transportadores de electrones que los trasladan (electrones) entre ellos.

Los electrones intervienen en una serie de reacciones redox en las que se emplea energía libre para transportar iones de hidrógeno a través de la membrana gracias al papel de la enzima ATP sintasa. Este proceso contribuye al gradiente usado en la quimiosmosis (difusión de iones a través de una membrana) que genera el 90% del ATP creado durante el metabolismo aeróbico de la glucosa.
Componentes de la cadena de transporte de electrones

Los electrones que toman parte en la cadena de transporte van perdiendo su energía gradualmente, por lo que para completarla se aportan a ella electrones de alta energía procedentes de los compuestos NADH o FADH2 del proceso anterior (ciclo de Krebs).

Al final de esta ruta metabólica, los electrones van a reducir moléculas de oxígeno a iones de oxígeno y los electrones extras de estos iones atraen iones de hidrógeno (protones) del medio circundante, dando como resultado moléculas de agua que junto con el ATP son los productos finales de la cadena de transporte de electrones.

El número de moléculas generadas durante el catabolismo de la glucosa varía en función de factores como el número de iones de hidrógeno que los complejos de la cadena de electrones bombean a través de la membrana mitocondrial, el transporte de electrones o del uso para otros propósitos de los compuestos intermedios producidos en estas rutas.


Metabolismo sin oxígeno

En la respiración aeróbica, el aceptor final de electrones es la molécula de oxígeno y se produce ATP gracias a los electrones de alta energía transportados a la cadena de transporte por las moléculas NADH o FADH2.
Si la respiración aeróbica no tiene lugar, el NADH debe ser re-oxidado a NAD+ para su reutilización como portador de electrones y de este modo la ruta glucolítica continúe.
Los organismos vivos emplean dos mecanismos distintos para lograrlo:
▣      Pueden usar como aceptor final de electrones una molécula orgánica para regenerar NAD+ a partir de NADH en un proceso denominado fermentación. Una de las fermentaciones más famosas es la del ácido láctico, utilizada por los glóbulos rojos en los músculos esqueléticos de los mamíferos cuando carecen del aporte necesario de oxígeno para continuar la respiración aeróbica.
Esquema de la fermentación del ácido láctico
▣      La segunda opción es utilizar una molécula inorgánica en su lugar.
En ambos métodos, los organismos transforman energía para su uso en la ausencia de oxígeno y se conocen con el nombre de respiración celular anaeróbica.
Procesos de respiración aeróbica y anaeróbica


Regulación de la respiración celular

La respiración celular debe regularse con el fin de que se suministren las cantidades de energía requeridas en cada momento en forma de ATP.
La célula debe regular, por tanto, su metabolismo y para ello cuenta con una variedad de mecanismos.
Por ejemplo, la entrada de glucosa a la célula es controlada por unas proteínas de transporte (transportadores GLUT) que ayudan a la glucosa a atravesar la membrana celular. Pero la mayor parte del control de los procesos de respiración se consigue mediante aquellas enzimas específicas que actúan en cada una de las rutas.
Mecanismo de incorporación celular de la glucosa
Estas enzimas responden sobre todo a los niveles disponibles de los nucleósidos ATP, ADP, AMP, NAD+ y FAD, los cuales, a su vez, incrementan o disminuyen la actividad de las enzimas en aquellas rutas en la que intervienen.

Hemos estudiado que el metabolismo de la glucosa es el encargado de proveer energía a las células vivas. Sin embargo, los seres vivos consumen en sus dietas una gran variedad de nutrientes diferentes a la glucosa. ¿Cómo terminan, por tanto, los diversos alimentos que consumimos en ATP en las células?
Ello es debido a que las rutas catabólicas de los lípidos, proteínas y carbohidratos están conectadas a la larga con las rutas de la glucólisis y el ciclo del ácido cítrico.
Estas rutas no son ciclos cerrados, sino que muchos de los sustratos, productos intermedios y finales se utilizan como reactivos en otras de ellas.
Conexión de carbohidratos, proteínas y lípidos con el metabolismo de la glucosa


[1] Es un complejo proteico (enzima) transmembranal que cataliza la síntesis de ATP mediante la energía suministrada por un flujo de protones (H+) y al añadir un grupo fosfato al ADP. 

Fuentes: OpenStax College, Biology. OpenStax College. 30 May 2013.
              https://chelseaharripersad.wordpress.com/2013/04/13/the-electron-transport-chain/
              http://healthylifemed.com/aerobic-vs-anaerobic-respiration/
              https://adapaproject.org/bbk_temp/tiki-index.php?page=Leaf%3A+Why+do+cells+need+fermentation+to+continue+glycolysis%3F
              http://163.178.103.176/Fisiologia/general/dinamica/FG05_17a.jpg


Leer más

4.3.1. Respiración celular I: Glucólisis. Ciclo de Krebs

0 comentarios
Al igual que las centrales eléctricas transforman un tipo de energía en otra para que pueda ser utilizada más fácilmente, la energía que introducimos en nuestros organismos, gracias a los nutrientes que consumimos, es transformada para que las células puedan usarla y desempeñar sus funciones.
Así, mediante una serie de rutas metabólicas (denominadas colectivamente respiración celular), se consigue extraer la energía de los enlaces de glucosa y convertirla en una forma de energía que todos los organismos vivos pueden emplear.
Rutas metabólicas de la respiración celular

Energía en los seres vivos

Una célula viva no puede almacenar cantidades importantes de energía libre, ya que produciría un incremento en la temperatura de la célula que podría dañarla y posteriormente destruirla. Por tanto, la célula debe acumular esa energía de un modo seguro y liberarla sólo cuando sea necesario, lo cual consiguen gracias al compuesto trifosfato de adenosina (ATP), que como se ha mencionado en otras ocasiones, se le considera la “moneda energética” de la célula.

El ATP permite a la célula guardar energía brevemente y transportarla dentro de ella para favorecer reacciones químicas endergónicas.
La estructura del ATP consiste en una molécula de monofosfato de adenosina (AMP[1]), la cual a su vez, se compone de una molécula de adenina unida a una molécula de ribosa y a un grupo fosfato. La incorporación de un segundo grupo fosfato origina difosfato de adenosina (ADP) y la adición de un tercer grupo fosfato da lugar finalmente al trifosfato de adenosina (ATP).

La vida para llevar a cabo sus procesos y obtener energía descompone continuamente ATP en ADP[2], a través de la reacción de hidrólisis del ATP, produciendo asimismo un ión de fosfato inorgánico:

ATP + H2O ⇔ ADP + fosfato inorgánico (Pi)
Hidrólisis del ATP

El agua que interviene en esta reacción se descompone en un átomo de hidrógeno y un grupo hidróxilo. Esta agua es regenerada al añadirse un tercer fosfato a la molécula de ADP, el cual reconstituye, a su vez, el ATP gracias a la adición de ese tercer grupo fosfato, operando de la misma manera que lo hace una batería recargable.

La energía de prácticamente todos los seres vivos procede del metabolismo de la glucosa. De esta manera, el ATP está conectado directamente al conjunto de rutas exergónicas del catabolismo de la glucosa y la infinidad de rutas endergónicas que proporcionan energía a las células.

Los dos procesos de regeneración de ATP utilizados en conjunción con el catabolismo de la glucosa son la fosforilación[3] a nivel sustrato y la fosforilación oxidativa.
En el primero de ellos, el ATP se produce a partir de ADP y un grupo fosfato procedente de un reactivo.
Pero la mayor parte del ATP generado (90%) durante el catabolismo de la glucosa se deriva de un proceso mucho más complejo que tiene lugar en la mitocondria: la quimiosmosis en el que se ve involucrado un gradiente de protones que cruza la membrana mitocondrial.
A la producción de ATP usando este mecanismo se le denomina fosforilación oxidativa al verse involucrado oxígeno en el mismo.


Glicólisis

La glicólisis o glucólisis fue probablemente una de las primeras rutas metabólicas empleadas durante la evolución de los seres vivos, siendo en el presente utilizada prácticamente por todos ellos.
Es la primera ruta en el proceso de descomposición de glucosa para la extracción de energía durante el metabolismo celular, que al no requerir de la participación de oxígeno se trata de un mecanismo anaeróbico.
Fases de la ruta metabólica de la glucólisis
Este proceso se compone de dos pasos:
▣      En la primera parte, el anillo de seis átomos de carbono de la glucosa se divide en dos moléculas de azúcar de tres átomos de carbono (denominadas piruvato) para lo cual se emplea ATP.
▣      En la segunda parte se extrae ATP y electrones de alta energía, a partir de átomos de hidrógeno, los cuales se unen al compuesto NAD+ (forma oxidada de la molécula NAD[4]).
En la primera de estas fases se invierten dos moléculas de ATP, mientras que se forman cuatro mediante fosforilación a nivel sustrato en la segunda de ellas.
El resultado final es una ganancia neta para la célula de dos moléculas de ATP y dos moléculas de NADH[5].
En el caso de que la célula no pueda catalizar más allá las moléculas de piruvato, tan sólo extraerá dos moléculas de ATP a partir de una molécula de glucosa.


Oxidación del piruvato y el ciclo del ácido cítrico (Ciclo de Krebs)

Si hay oxígeno disponible, la respiración aeróbica continúa adelante a partir del punto final de la glicólisis.
Las moléculas de piruvato producidas al término de esa ruta metabólica son transportadas al interior de la mitocondria donde se produce la respiración celular. Allí, el piruvato se transforma en un grupo acetilo que es recogido y activado por un compuesto transportador llamado coenzima A (CoA).
El compuesto resultante se denomina acetil coenzima A, el cual se compone de vitamina B5 (ácido pantoténico). La célula emplea este compuesto en una gran variedad de formas, pero su principal función es distribuir el grupo acetilo procedente del piruvato a la siguiente etapa del metabolismo de la glucosa (el ciclo del ácido cítrico).
Esquema del ciclo de Krebs
Durante la conversión del piruvato en un grupo acetilo, se eliminan una molécula de CO2 y dos electrones de alta energía. Este paso se repite en dos ocasiones, por lo que ese CO2 (2CO2) representa dos de los seis átomos de carbono de la molécula original de glucosa. Mientras que los electrones son recogidos por la molécula de NAD+ formando NADH, la cual conduce esos electrones a rutas posteriores en la producción de ATP.

En este punto, la molécula de glucosa que se introdujo en el mecanismo de respiración celular se ha oxidado completamente y la energía potencial que tenía almacenada se ha transferido a transportadores de electrones o se ha usado para sintetizar unos pocos ATPs.

A continuación, comienza el ciclo de ácido cítrico que también tiene lugar en la matriz mitocondrial.
A diferencia de la glicólisis, el ciclo de ácido cítrico es un ciclo cerrado, en el que en el último paso se regenera el compuesto utilizado en la primera etapa.
Se trata de un ciclo de ocho pasos consistente en una serie de reacciones de oxidación-reducción (redox), deshidratación, hidratación y descarboxilación, que produce dos moléculas de CO2, una molécula de GTP[6]/ATP y las formas reducidas de tres moléculas de NADH y una molécula de FADH2[7].

Este ciclo se le considera una ruta aeróbica porque estos dos últimos compuestos deben transferir sus electrones a la siguiente ruta del sistema, que empleará oxígeno y en la que se generará ATP.

Algunos de los compuestos intermedios de este ciclo pueden utilizarse para sintetizar aminoácidos no esenciales, lípidos y azúcares que puede servir como fuente de energía para las rutas metabólicas de la glucosa. Por tanto, el ciclo de Krebs es un ciclo anfibólico (tanto catabólico como anabólico).


[1] AMP es uno de los nucléotidos en la molécula de RNA.
[2] Difosfato de adenosina: compuesto orgánico constituido por adenosina y dos grupos fosfatos.
[3] Adición de un grupo fosfato a un compuesto, normalmente un producto intermedio metabólico, una proteína o ADP.
[4] Nicotinamida adenina dinucleótido: coenzima encontrada en las células vivas, cuya función principal es el intercambio de electrones y protones en las reacciones de producción de energía.
[5] Forma reducida de la molécula NAD que, por tanto, acepta electrones.
[6] Guanosin trifosfato es otro nucleótido trifosfato usado en el metabolismo celular. Su base nitrogenada es la purina guanina.
[7] Forma reducida del FAD (flavín adenín dinucleótido: coenzima que interviene en las reacciones metabólicas de oxidación-reducción) que recibe dos átomos de hidrógeno.

Fuentes: OpenStax College, Biology. OpenStax College. 30 May 2013.
              http://table4eversquishycells.pbworks.com/w/page/9947625/How%20Cells%20Get%20Energy
              http://bio100.class.uic.edu/lectures/atp_energy.jpg
              https://apbionotebook.wordpress.com/chapter-09-cellular-respiration-fermentation/
              http://msdoranbiology.weebly.com/notes---cp.html


Leer más

4.2. Metabolismo celular

0 comentarios
Prácticamente todas las tareas desarrolladas por los seres vivos requieren de energía. La energía no solamente se necesita para realizar ejercicios o tareas pesadas, también hacemos uso de ella cuando pensamos e incluso cuando dormimos, su utilización por parte de todos los organismos es, por tanto, constante.

La energía es necesaria para que las células del sistema inmunitario puedan absorber, digerir y descomponer virus y bacterias patógenas. Es también imprescindible para la eliminación de toxinas y desechos, el transporte de neurotransmisores y hormonas o la síntesis y descomposición química de moléculas.

Los nutrientes y otras moléculas son importados, metabolizados (descompuestos) y posiblemente sintetizados en otras moléculas, modificados en algunos casos, transportados a otras células y posiblemente distribuidos a todo el organismo.

Todos los procesos celulares, tales como la construcción y descomposición de moléculas complejas ocurren a través de una serie de reacciones químicas escalonadas.
Al conjunto de reacciones químicas que tienen lugar en el interior de las células, incluidas las que liberan y usan energía, se le denomina metabolismo celular.


Rutas metabólicas

Una ruta metabólica es una serie de reacciones químicas interconectadas que convierten una molécula/s sustrato, paso a paso mediante un conjunto de productos metabólicos intermedios, en un producto/s final/es.

En el caso del metabolismo del azúcar (clásico ejemplo de muchos procesos celulares), en una de sus rutas metabólicas se sintetiza glucosa (azúcar simple) a partir de moléculas más pequeñas:

6CO2 + 6H2 O + energía → C6 H12 O6 + 6O2

Mientras que en otra ruta metabólica distinta es la glucosa la que se descompone en moléculas más pequeñas:

C6H12O6 + 6O2 → 6CO2 + 6H2 O + energía

Consecuentemente, el metabolismo se compone de construcción o anabolismo (primera reacción) y descomposición o catabolismo (segunda reacción).

Estas rutas metabólicas no tienen lugar espontáneamente, sino que cada reacción es facilitada o catalizada por unas proteínas denominadas enzimas, que catalizan tanto las reacciones que liberan energía como las que requieren de su utilización.


Energía potencial, libre y de activación

Energía libre y de activaciónLas moléculas debido a la ruptura de sus enlaces tienen la capacidad de liberar energía, que se conoce con el nombre de energía potencial. Las células para desempeñar sus funciones dependen de la extracción de esa energía potencial.

La energía libre es un concepto que mide la disponibilidad de energía para llevar a cabo un trabajo. Esta energía libre es modificada durante las reacciones químicas (donde ocurren transferencias de energía) y a este cambio se le denomina energía libre de Gibbs (ΔG).
Reacciones exergónicas y endergónicas
El valor de ΔG puede ser negativo, con lo cual se libera energía, son las denominadas reacciones exergónicas o espontáneas. Por el contrario, si el valor de ΔG es positivo, la reacción consume energía y hablamos entonces de reacciones endergónicas o no espontáneas.

Si una reacción es espontánea indica que sus productos tienen menos energía que sus reactivos, y viceversa en las reacciones no espontáneas.
Sin embargo, independientemente del tipo de reacción, todas ellas requieren de un aporte inicial de energía para alcanzar el estado de transición[1]. Este aporte se conoce como energía de activación.


ATP: Trifosfato de adenosina

El ATP es la molécula suministradora de energía primaria en las células vivas. Se compone de un nucleótido, una pentosa (monosacárido de cinco átomos de carbono) y tres grupos fosfatos. Los enlaces que conectan estos tres fosfatos poseen un alto contenido energético que al romperse potencian una serie de reacciones y procesos celulares.
La energía que se libera en la reacción de la hidrólisis del ATP es la que se emplea para desarrollar el trabajo celular:

ATP +H2O → ADP + Pi[2] + energía libre (reacción reversible)
Hidrólisis del ATP

Las células usan ATP para realizar su trabajo al acoplar la reacción exergónica de la hidrólisis del ATP con reacciones endergónicas. El ATP dona su grupo fosfato a otra molécula a través de un proceso conocido como fosforilación. Esta molécula fosforilada es menos estable que su forma no fosforilada, pero la energía añadida tras la adición del fosfato permite que ejecute las reacciones endergónicas necesarias para que la célula lleve a cabo sus funciones.


Enzimas

Las enzimas son, por lo habitual, proteínas de una o más cadenas polipeptídicas que aceleran las reacciones químicas que se producen a temperaturas fisiológicas, al disminuir sus energías de activación.
Se unen a los sustratos[3] para catalizar las reacciones de cuatro modos distintos:
▣      Participando directamente en las reacciones químicas al formar enlaces covalentes momentáneos con los sustratos.
▣      Uniendo los sustratos en una disposición óptima.
▣      Proporcionando unas condiciones óptimas para que ocurra la reacción.
▣      Actuando sobre las estructuras de los enlaces para que puedan ser rotos más fácilmente.
Funcionamiento de una enzima

Las enzimas van a estar reguladas por condiciones celulares como el pH, la temperatura, su localización dentro de la célula (al estar algunas de ellas compartimentadas).
Pero el mecanismo más común por el que las células regulan las enzimas en las rutas metabólicas es mediante la retroalimentación negativa, en la que los productos de una ruta metabólica actúan como inhibidores (normalmente alostéricos[4]) de una o más enzimas involucradas en la ruta que las producen.
Reacción e inhibición en enzimas


[1] Estado de muy alta energía y corta duración que se produce cuando los reactivos de una reacción se aproximan y experimentan una deformación.
[2] Grupo fosfato inorgánico.
[3] Reactivos químicos específicos sobre los que actúan una enzima en particular.
[4] Disminuyen la actividad de la enzima al provocar un cambio estructural de ésta, los receptores de las enzimas se ven modificados y adoptan su conformación inactiva.

Fuentes: OpenStax College, Biology. OpenStax College. 30 May 2013.
              http://cienciasdejoseleg.blogspot.com.es/2013/03/plicacion-de-las-variables.html
              http://teenbiotechchallenge.ucdavis.edu/2010_TBC/Peter%20Wang,%20Clara%20Fannjiang,%20William%20Liu/Chemistry.html
              https://mollycools.wordpress.com/2014/03/10/enzymes/
              https://commons.wikimedia.org/wiki/File:Allosteric_competitive_inhibition_3.svg


Leer más

4.1.3. La membrana plasmática. Transporte celular

0 comentarios
Entre las diversas funciones de la membrana celular o plasmática, la más básica es establecer los límites de la célula y mantenerla funcional.
La membrana es permeable de manera selectiva, con lo que algunos elementos pueden entrar y abandonar la célula libremente, mientras que otros requieren de una estructura especializada e incluso de energía para ello.

Entre las vías de transporte que emplea la célula a través de su membrana celular encontramos:

Transporte pasivo

Es un fenómeno que ocurre de manera natural y que no requiere que la célula emplee ningún tipo de energía para lograr el movimiento de las sustancias que atraviesan la membrana plasmática.
En este transporte las sustancias pasan de una zona de más alta concentración a otra de más baja concentración.
Los mecanismos del transporte pasivo se dividen en:

▣      Difusión: en este mecanismo una única sustancia se mueve de un área de alta concentración a otra de menor concentración hasta que ésta se iguala en ambas zonas.
Una variación de la difusión es el proceso de filtración en el que el material se traslada a través de la membrana de acuerdo al gradiente de concentración[1]. En algunas ocasiones la tasa de difusión se incrementa por la presión causando que las sustancias se filtren más rápidamente. Este es el fenómeno que ocurre en los riñones donde la presión sanguínea fuerza a grandes cantidades de agua y sustancias disueltas en ella (solutos) pasar del torrente sanguíneo a los túbulos renales.

▣      Difusión facilitada: la difusión de las sustancias se lleva a cabo por medio de la membrana plasmática con la ayuda de las proteínas integradas en ella, las cuales actúan como escudos para estas sustancias (iones, moléculas polares) contra las fuerzas repulsivas de la membrana, facilitando su difusión en la célula.

▣      Ósmosis: se trata de un caso especial de difusión en el que en lugar de transportar material, se transporta agua a través de la membrana, siendo ésta la que limita la difusión de solutos en el agua. Este proceso es mediado por unas proteínas específicas denominadas acuaporinas.
Transporte pasivo y activo

Dependiendo de la relación entre la osmolaridad[2] de una célula y la del fluido extracelular que la contiene, distinguimos tres situaciones:

▣      Soluciones hipotónicas: el fluido extracelular tiene una osmolaridad menor que la del fluido interior de la célula, por lo que el agua penetra en ella.

▣      Soluciones hipertónicas: el fluido extracelular posee una osmolaridad más alta que el citoplasma de la célula, por lo que el agua abandona la célula.

▣      Soluciones isotónicas: tanto la célula como el fluido extracelular tienen la misma osmolaridad. Como consecuencia existe un equilibrio dinámico, es decir, se produce un intercambio constante de agua entre ambas zonas.
Distintos tipos de soluciones

Transporte activo

Estos tipos de mecanismos, también denominado bombas, requieren el uso de energía por parte de la célula, normalmente en forma de trifosfato de adenosina (ATP). Este requerimiento energético es necesario, puesto que la sustancia a desplazar lo va a hacer en contra de un gradiente de concentración (es decir, la concentración de la sustancia dentro de la célula es mayor que en el fluido extracelular o viceversa).
Mediante este mecanismo se transportan moléculas de una amplia variedad de tamaños.

En los organismos vivos no solamente existen simples gradientes de concentración de sustancias, sino también un gradiente eléctrico que indica una diferencia de carga a través de la membrana celular.

El interior de la célula es eléctricamente negativo en comparación al fluido extracelular y posee mayor concentración de iones K+ y menor concentración de iones Na+ que él.
Como consecuencia de ello, los gradientes eléctricos y de concentración del Na+ tienden a dirigir este ión hacia el interior de la célula.
La situación es más compleja con los iones de K+, ya que mientras su gradiente eléctrico también tiende estos iones hacia el interior de la célula, su gradiente de concentración los dirige hacia el exterior.

Estos gradientes combinados de concentración y carga eléctrica que afectan a un ión se denominan gradientes electroquímicos.

Una adaptación importante de la membrana para el transporte activo es la presencia de proteínas específicas transportadoras (bombas) que facilitan el desplazamiento de sustancias a ambos lados de la misma. Existen tres tipos de estas proteínas o transportadores:

- Uniportadores: transportan un ión o molécula específico en un solo sentido.
- Simportadores: trasladan dos iones o moléculas diferentes en la misma dirección.
- Antiportadores: también conducen simultáneamente dos iones o moléculas distintas pero en direcciones opuestas.
Tipos de transportadores

Transporte activo primario
Funciona con el transporte activo de Na y K y permite que en una etapa posterior ocurra el transporte activo secundario.

Uno de los mecanismos de transporte activo más importante en las células animales es la bomba de Na+ -K+ que mantiene el gradiente electroquímico y las concentraciones adecuadas de Na+ y K+ en las células.
Durante este proceso por cada tres iones de Na+ que se expulsan al exterior de la célula, penetran dos iones de K+, con lo que el interior es ligeramente más negativo que el exterior. Esta diferencia en la carga es importante para crear las condiciones necesarias del segundo proceso.

La bomba de Na-K pertenece a las denominadas bombas electrogénicas, las cuales son bombas iónicas que generan una diferencia de potencial o de carga eléctrica entre ambos lados de la membrana celular.

Transporte activo secundario (Cotransporte)
Mediante este proceso se introducen en la célula iones Na+ y otros compuestos aprovechando el gradiente electroquímico creado en el paso anterior.
En esta clase de transporte activo un soluto que va en contra del gradiente de concentración es cotransportado con otro soluto a favor de su gradiente de concentración.
De este modo, logran entrar en la célula muchas moléculas como la glucosa o los aminoácidos.
Este proceso también se utiliza para el almacenamiento en las mitocondrias de iones de hidrógeno de alta energía para la producción de ATP.


Transporte en masa

Además de pequeñas moléculas e iones, las células también necesitan eliminar y asimilar partículas y moléculas de tamaño superior y para ello van a requerir un aporte energético. Sin embargo, estas moléculas van a ser tan grandes que incluso con la energía suministrada por la célula tampoco conseguirían atravesar la membrana celular.
Por ello, la célula emplea los siguientes mecanismos:

Endocitosis
Proceso de endocitosis
Es un tipo de transporte activo en el que las partículas, como moléculas de gran tamaño, partes de células e incluso células enteras, son englobadas por invaginación de la membrana plasmática formando una vesícula cuyo contenido es transportado del exterior al interior del citoplasma.

Podemos destacar los siguientes tipos de endocitosis:

▣      Fagocitosis: es el proceso por el que las células o partículas grandes son ingeridas por una célula. Este es el mecanismo empleado por un tipo de glóbulos blancos denominados neutrófilos con el que rodean, envuelven y destruyen los microorganismos que invaden el cuerpo humano.

▣      Pinocitosis: es un tipo de endocitosis en el que la célula capta las moléculas que necesita del fluido extracelular. La membrana plasmática se invagina formando una vesícula alrededor del líquido del medio externo, que es incorporado en la célula y liberado en el citoplasma.
El proceso de maduración del óvulo en el útero se realiza al incorporar por pinocitosis los nutrientes que le ceden las células nodrizas que lo rodean.

▣      Endocitosis mediada por receptor: se emplean proteínas receptoras de la membrana celular que poseen una afinidad específica para unirse a ciertas sustancias.
Tipos de endocitosis en células animales

Algunas enfermedades humanas son causadas por el mal funcionamiento de este mecanismo. Es el caso de la hipercolesterolemia familiar, en la que se carece de los receptores del colesterol malo (LDL) o son defectuosos.

Exocitosis
Proceso de exocitosis
Proceso inverso a la endocitosis en el que se expulsa material de la célula al medio exterior.
El material de desecho es envuelto con un saco membranoso que se fusiona con la membrana plasmática y posteriormente se abre para liberar su contenido al medio extracelular.
La secreción de neurotransmisores mediante vesículas en la brecha sináptica de las neuronas sigue este mecanismo.


[1] Diferencia en la concentración de moléculas entre dos regiones.
[2] Describe la concentración total de soluto de una solución.

Fuentes: OpenStax College, Biology. OpenStax College. 30 May 2013.
              http://www.educ.ar/sitios/educar/recursos/ver?id=14378
              http://sevendaysperweek.blogspot.com.es/2015/09/spm-biology-3-movement-of-substances_20.html
              http://cbc.arizona.edu/classes/bioc462/462a/NOTES/LIPIDS/transport.html
              Nelson & Cox, Lehninger Principles of Biochemistry, 3rd ed., 2000
              http://es.slideshare.net/exitoinevitable/clulas-31270712
              https://micro.magnet.fsu.edu/cells/endosomes/endosomes.html


Leer más

4.1.2. El sistema endomembranoso. El citoesqueleto

0 comentarios
El sistema endomembranoso es un grupo de orgánulos y membranas que trabajan conjuntamente para modificar, empaquetar y transportar proteínas y lípidos. Incluye al envoltorio nuclear, lisosomas y vesículas, que ya hemos mencionado en la entrada anterior: “Células procariotas y eucariotas. Sus principales componentes”, el retículo endoplasmático y el aparato de Golgi.

Retículo endoplasmático

Se trata de una serie de sacos membranosos y túbulos interconectados que de manera colectiva modifican proteínas y sintetizan lípidos. Estas dos funciones se llevan a cabo en dos áreas distintas: el retículo endoplasmático rugoso y el retículo endoplasmático liso.

Retículo endoplasmático rugoso (RER)
Recibe este nombre debido al aspecto que le confiere los ribosomas pegados a su superficie citoplasmática.
Los ribosomas transfieren las proteínas que sintetizan al lumen del RER donde se someten a modificaciones para posteriormente ser incorporadas en la membrana celular o secretadas fuera de la célula a través de vesículas que surgen de la membrana del RER.
Estos procesos ocurren con hormonas, enzimas e incluso algunos fosfolípidos generados por el RER y que van a formar parte de las membranas celulares.
El retículo endoplasmático rugoso se halla de manera abundante en células que segregan una gran cantidad de proteínas como las células hepáticas.

Retículo endoplasmático liso (REL)
El retículo endoplasmático liso es continuo al rugoso con la diferencia de que posee pocos o ningún ribosoma en su superficie citoplasmática.
Entre sus funciones se hallan la síntesis de carbohidratos, lípidos, hormonas esteroideas, desintoxicación de venenos y medicamentos y almacenamiento de iones de calcio.
En las células musculares recibe el nombre de retículo sarcoplasmático (RS) encargado de almacenar iones de calcio necesarios para la contracción de las células musculares.
Estructura del retículo endoplasmático

Aparato de Golgi

Antes de alcanzar su destino las proteínas y lípidos transportados por las vesículas del RE han de ser etiquetadas, clasificadas, empaquetadas y distribuidas. Estas funciones son desempeñadas por el aparato de Golgi que consta de una serie de membranas aplanadas o cisternas.
El lado receptor del aparato de Golgi se denomina cara cis o de entrada y el lado opuesto cara trans o de salida.

A medida que las proteínas y los lípidos viajan a través del aparato de Golgi están sometidas a una serie de modificaciones que permiten clasificarlas. La más habitual de todas ellas es la adición de cadenas cortas de moléculas de azúcar.
Estructura del aparato de Golgi

Posteriormente, se etiquetan con grupos fosfatos u otras moléculas pequeñas para que sean dirigidas a sus destinos correspondientes.
Finalmente, se empaquetan en vesículas secretoras que surgen de la cara trans del aparato de Golgi. Algunas de ellas se depositan en otras partes de la célula, mientras que otras se fusionan con la membrana celular y liberan su contenido al exterior.

Células como las del sistema inmunitario que segregan anticuerpos se caracterizan por su abundancia en aparatos de Golgi.


Lisosomas

Además de su papel digestivo y de reciclaje de orgánulos, los lisosomas también forman parte del sistema endomembranoso.
Los lisosomas emplean sus enzimas hidrolíticas para destruir patógenos que penetran en la célula.
Un ejemplo de lisosomas lo constituyen un tipo de glóbulos blancos denominados macrófagos, que mediante fagocitosis o endocitosis invagina (pliega y dobla) su membrana celular para envolver y englobar al patógeno, que posteriormente es destruido bajo la acción de las enzimas hidrolíticas de los lisosomas.


EL CITOESQUELETO

Es el conjunto de fibras de proteínas que mantienen la forma de la célula, fijan los orgánulos en posiciones concretas, permite a las vesículas moverse dentro de la célula y posibilita que las células de los organismos multicelulares puedan desplazarse.

Microfilamentos

De los tres tipos de fibras de proteínas del citoesqueleto, los microfilamentos son los más estrechos con un diámetro de alrededor 7 nm.
Consisten en dos hebras entrelazadas de la proteína actina, por lo que también se conocen como filamentos de actina.
Intervienen en procesos que requieren movimiento como la división celular en las células animales. También proporcionan rigidez y forma a la célula.

Filamentos intermedios

Su función es puramente estructural, soportan tensión y fijan el núcleo y otros orgánulos en sus posiciones correspondientes.
Su diámetro se sitúa entre los 8 y los 10 nm y consisten en varias hebras de fibras proteicas enrolladas entre sí.
Los filamentos de queratina son los más conocidos de todos ellos, entre cuyas funciones se encuentran fortalecer las uñas, la epidermis de la piel y el cabello.

Microtúbulos

Entre las actividades más importantes desarrolladas por los microtúbulos encontramos el desplazamiento de los cromosomas replicados a extremos opuestos de la célula durante la división celular. También proporcionan una vía sobre la que se mueven las vesículas en la célula y la ayudan a soportar la compresión.
Son los componentes más grandes del citoesqueleto con un diámetro de 25 nm.
Clasificación de los filamentos del citoesqueleto

Flagelos y cilios

Los flagelos son apéndices movibles de larga longitud que se extienden desde la membrana plasmática y permiten el desplazamiento de las células que los poseen (p.ej., espermatozoides).

Los cilios, por el contrario, son de corta longitud y se extienden en gran número por toda la superficie de la membrana plasmática.
Al igual que los flagelos posibilitan el traslado de células (paramecios) o sustancias sobre la superficie externa de la célula, como por ejemplo los cilios que recubren las trompas de Falopio que desplazan el óvulo hacia el útero.


CONEXIONES CELULARES

Como puedes imaginar, si las células tienen que trabajar juntas deben comunicarse entre ellas, veamos qué medios y métodos utilizan para ello.

Matriz extracelular de células animales

La matriz extracelular tiene como funciones fundamentales mantener las células unidas para formar un tejido y la comunicación celular en el mismo.
Se compone principalmente de un tipo de proteína denominada colágeno entrelazada con otros tipos de proteínas que contienen carbohidratos (proteoglicanos).

De manera general, la comunicación celular se realiza del siguiente modo:
Las células cuentan con unos receptores en la superficie de sus membranas plasmáticas. Cuando una molécula dentro de la matriz se une al receptor, modifica su estructura molecular. El receptor, a su vez, modifica la conformación de los microfilamentos situados dentro de la membrana. Estos cambios generan señales químicas que alcanzan el núcleo, activando y desactivando la transcripción de secciones específicas del DNA, lo cual afecta la producción de las proteínas asociadas con esa transcripción.

Las células también pueden comunicarse mediante contacto directo a través de las uniones intercelulares formadas por distintos tipos de proteínas. En las células animales estas uniones son de tres clases:

▣      Uniones estrechas u ocluyentes: sellan las membranas plasmáticas de células adyacentes creando una barrera impermeable entre ellas. Forman parte, por ejemplo, de las células epiteliales de la vejiga urinaria. Sus componentes principales son las proteínas claudinas y ocludinas.

▣      Desmosomas: actúan como puntos de soldadura entre las células epiteliales de tejidos y órganos sometidos a contracción como la piel, el corazón y los músculos. Están constituidas por unas proteínas de longitud corta denominadas cadherinas.

▣      Uniones de hendidura: funcionan como poros o canales que permiten el transporte de nutrientes e iones. Son especialmente importantes en el músculo cardíaco, donde posibilitan el paso de la señal eléctrica que contrae el músculo.
Están formadas por un grupo de seis proteínas llamadas conexinas que se disponen en la membrana plasmática en una configuración con forma de dónuts conocida como conexón.
Tipos de uniones intercelulares

Fuentes: OpenStax College, Biology. OpenStax College. 30 May 2013.
              http://www.oncoursesystems.com/images/user/9341/10845583/rough%20er.bmp
              http://apocketmerlin.tumblr.com/post/14923100822/a-summary-of-the-functions-of-major-eukaryotic
              http://iesicaria.xtec.cat/~SBG/BiologiaCurtis/Seccion%201/1%20-%20Capitulo%205.htm
              https://ohhaitrish.wordpress.com/2012/02/12/unit-one-compilation/


Leer más